Ciencia y Salud, Vol. 10, No. 3, septiembre-diciembre, 2026 • ISSN (impreso): 2613-8816 • ISSN (en línea): 2613-8824
EL MESENCÉFALO COMO EJE INTEGRADOR DE LAS FUNCIONES ENCEFÁLICAS COMPLEJAS
The mesencephalon as an integrative axis of complex encephalic functions
DOI: https://doi.org/10.22206/cisa.2026.v10i3.3682
Recibido: 07/02/2026 ● Aceptado: 02/04/2026
Cómo citar: Reynoso-Arellano, E., Jiménez-Carvajal, J., Marte-Santana, H. (2026). El mesencéfalo como eje integrador de las funciones encefálicas complejas. Ciencia y Salud, 10(3), 127-142. https://doi.org/10.22206/cisa.2026.v10i3.3682
Resumen
Introducción: Las funciones encefálicas complejas han sido tradicionalmente atribuidas al aumento del tamaño encefálico y a la actividad cortical. Sin embargo, evidencia reciente sugiere que estas explicaciones resultan insuficientes y que estructuras subcorticales, particularmente el mesencéfalo, podrían desempeñar un rol decisivo en la emergencia y organización de la cognición de alto orden. El presente trabajo examina críticamente esta hipótesis desde un enfoque integrador.
Método: Se realizó una revisión narrativa de la literatura utilizando la base de datos PubMed. Tras una búsqueda inicial de 12,736 artículos, se aplicaron filtros temporales (2016–2026) y criterios de relevancia temática, seleccionando finalmente 10 estudios experimentales en humanos y modelos animales que aportan evidencia empírica directa sobre el rol funcional del mesencéfalo en distintos dominios cognitivos.
Resultados: Los estudios revisados convergen en mostrar que el mesencéfalo participa activamente en procesos de atención, percepción, memoria y funciones ejecutivas, mediante circuitos que integran información sensorial, motivacional y contextual, e interactúan de forma dinámica con redes corticales y límbicas. Estas funciones no se limitan a la modulación inespecífica, sino que reflejan un rol organizador y estabilizador de la actividad cerebral a gran escala.
Conclusiones: En conjunto, la evidencia respalda la conceptualización del mesencéfalo como un eje integrador de las funciones encefálicas complejas, cuestionando modelos estrictamente corticales y jerárquicos.
Palabras clave: Mesencéfalo, funciones encefálicas complejas, neurociencia, cognición subcortical, revisión narrativa.
Abstract
Introduction: Complex brain functions have traditionally been attributed to increases in brain size and to cortical activity. However, recent evidence suggests that these explanations are insufficient and that subcortical structures, particularly the midbrain, may play a decisive role in the emergence and organization of higher-order cognition. The present work critically examines this hypothesis from an integrative perspective.
Method: A narrative review of the literature was conducted using the PubMed database. Following an initial search that identified 12,736 articles, temporal filters (2016–2026) and thematic relevance criteria were applied, ultimately selecting 10 experimental studies in humans and animal models that provide direct empirical evidence on the functional role of the midbrain across different cognitive domains.
Results: The reviewed studies converge in showing that the midbrain actively participates in attention, perception, memory, and executive functions through circuits that integrate sensory, motivational, and contextual information and dynamically interact with cortical and limbic networks. These functions are not limited to nonspecific modulation but instead reflect an organizing and stabilizing role of large-scale brain activity.
Conclusions: Taken together, the evidence supports the conceptualization of the midbrain as an integrative axis of complex brain functions, challenging strictly cortical and hierarchical models.
Keywords: Midbrain, complex brain functions, neuroscience, subcortical cognition, narrative review.
Introducción
Las funciones encefálicas complejas o procesos cognitivos (atención, percepción memoria, lenguaje y funciones ejecutivas), son el producto de bioactividades emergentes del encéfalo a través de circuitos interconectados1-3. Estos circuitos interactúan, en forma sinérgica, promoviendo intercambios de información entre el sistema nervioso, otros sistemas del organismo y el medio ambiente garantizando una dinámica cerebral integrada y adaptativa que permite procesar información y generar modelos predictivos de la realidad4-6. Asimismo, abarcan una amplia gama de factores ontogenéticos-filogenéticos con la finalidad de evocar respuestas que favorezcan la expresión genética individual7-8.
Durante los siglos XIX y XX, se creía que el incremento volumétrico del encéfalo, tanto en términos absolutos como relativos al tamaño corporal, explicaba el surgimiento de las funciones encefálicas complejas; sin embargo, la evidencia contemporánea indica que estas variables no constituyen factores determinantes por sí mismas9-10. De forma similar, históricamente se atribuyó a la corteza cerebral un rol predominante en la generación de las funciones encefálicas complejas. No obstante, estudios recientes señalan que la cantidad de neuronas, su organización microestructural y los patrones de conectividad desempeñan un papel crucial en su emergencia, respondiendo a relaciones multifactoriales que trascienden tanto el tamaño encefálico como la corteza cerebral3, 11-12.
A pesar de estos avances, las razones que impulsaron el desarrollo del encéfalo y la emergencia de sus funciones complejas aún no se comprenden completamente13. En este contexto, resulta necesario profundizar en estructuras tradicionalmente subestimadas en el estudio de las funciones encefálicas complejas, entre ellas el mesencéfalo, comúnmente asociado a funciones sensoriomotoras y reflejas14.
El mesencéfalo constituye una estructura integradora capaz de modular la actividad cerebral mediante circuitos que influyen de manera decisiva en las funciones encefálicas complejas15-16. En este sentido, resulta plausible considerar que el desarrollo de las funciones encefálicas complejas dependa, al menos en parte, de mecanismos mesencefálicos que permiten estabilizar, coordinar y regular la actividad cerebral a gran escala17-19. Desde esta perspectiva, el mesencéfalo podría actuar como un eje integrador que garantice las condiciones neurobiológicas necesarias para que la complejidad funcional emerja y se mantenga de manera coherente.
Evidencia convergente proveniente de estudios de optogenética, registros electrofisiológicos, fotometría, trazado neuronal viral, análisis de casos clínicos paradigmáticos, entre otros, sugieren que el mesencéfalo no solo participa en funciones sensoriomotoras, sino que cumple un rol integrador en las funciones encefálicas complejas, influyendo directamente en procesos atencionales, perceptivos, mnésicos y ejecutivos16-17, 19-20.
Por lo tanto, el objetivo del presente artículo es realizar una revisión narrativa de la evidencia experimental reciente sobre el rol del mesencéfalo en las funciones encefálicas complejas, integrando hallazgos provenientes de estudios en humanos y modelos animales. Asimismo, se busca analizar críticamente su participación en la modulación y coordinación de la actividad neurológica. Para ello, se adoptó un enfoque de revisión narrativa basado en la identificación y análisis de estudios experimentales recientes obtenidos mediante búsqueda en la base de datos PubMed, priorizando investigaciones publicadas en los últimos diez años que aportaran evidencia empírica directa sobre la participación funcional del mesencéfalo.
Metodología
Para esta revisión narrativa, la obtención de evidencia se realizó mediante la consulta de la base de datos PubMed. Dado que el objetivo del trabajo es ofrecer una integración conceptual y teórica de la evidencia disponible, se adoptó un enfoque de revisión narrativa. A diferencia de las revisiones sistemáticas, este tipo de revisión no busca una identificación exhaustiva y protocolizada de todos los estudios disponibles, sino la selección y el análisis crítico de investigaciones relevantes que permitan contextualizar y discutir el fenómeno de interés.
La estrategia de búsqueda se estructuró utilizando las palabras clave mesencephalon y midbrain, combinadas con términos relacionados con funciones cognitivas, incluyendo cognition, cognitive function, executive functions, attention, memory y learning. Estas se combinaron mediante operadores booleanos de la siguiente forma: (mesencephalon OR midbrain) AND (cognition OR cognitive function OR executive functions OR attention OR memory OR learning).
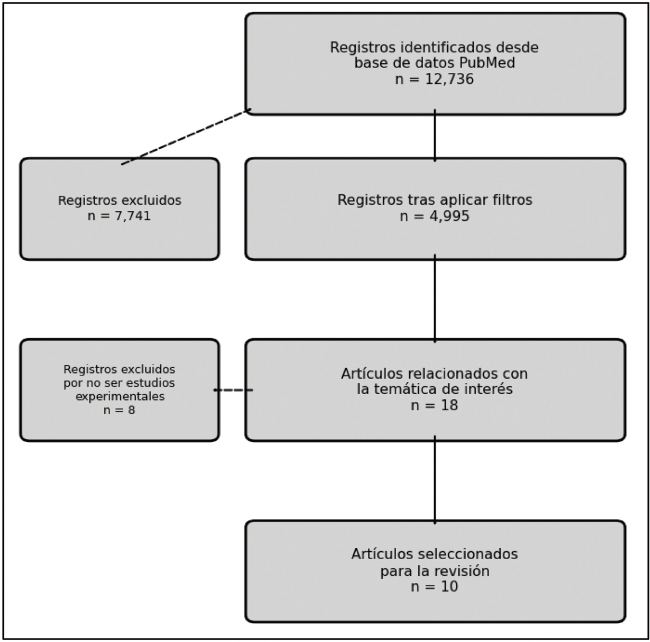
Inicialmente se identificaron 12,736 artículos relacionados con la participación del mesencéfalo en funciones encefálicas complejas. Tras aplicar filtros por año de publicación, la búsqueda se restringió a estudios publicados en los últimos diez años (2016–2026), resultando en un total de 4,995 artículos. A partir de este conjunto, se realizó una selección basada en criterios de relevancia temática, identificándose 18 trabajos clave. De estos, se incluyeron finalmente 10 estudios experimentales, mientras que 8 fueron excluidos por no corresponder a diseños experimentales (Figura 1). Los estudios seleccionados constituyen el núcleo de esta revisión narrativa, al aportar evidencia empírica directa sobre el rol funcional del mesencéfalo en distintos dominios, tanto en humanos como en modelos animales.
Figura 1. Diagrama de flujo revisión narrativa
Fuente: Elaboración propia.
Debido a la naturaleza narrativa de la revisión, la selección de estudios se basó en criterios de relevancia conceptual y contribución empírica al tema, lo que puede introducir cierto grado de sesgo de selección. No obstante, se priorizaron investigaciones experimentales recientes que aportaran evidencia directa sobre la participación funcional del mesencéfalo.
Estudios incluidos y caracterización mesencefálica
Con el fin de organizar de manera sistemática la evidencia incluida en esta revisión narrativa, los estudios seleccionados se agruparon según la función predominante a la que contribuyen, más que por la técnica empleada o la región anatómica específica. Esta categorización funcional permite integrar hallazgos y resaltar patrones sobre el papel del mesencéfalo en las funciones encefálicas complejas (Tabla 1).
Tabla 1. Características generales de estudios incluidos
Función |
Autor(es) |
Tipo de estudio |
Muestra |
Técnicas |
Región Mesencefálica |
Hallazgo |
Atención |
Campagner et al. (2023) |
Experimental |
Ratones |
Registros electrofisiológicos y quimiogenética |
Colículo Superior |
Convierte información mnésica en movimientos automáticos ante las demandas del entorno. |
Percepción |
Quass et al. (2023) |
Experimental |
Ratones |
Imágenes de calcio |
Colículo Inferior |
Integra lo que percibimos con lo que planeamos hacer y las consecuencias esperadas, no solo transmite información sensorial pasivamente. |
Percepción |
Molas et al. (2024) |
Experimental |
Ratones |
Fotometría de fibra, optogenética, ablación genética selectiva y rastreo viral retrógrado |
Núcleo Interpeduncular |
Aprende a percibir cuándo un estímulo amenazante es realmente seguro, actualizando cognitivamente la evaluación de riesgo. |
Memoria |
Elliott et al. (2022) |
Experimental |
Humanos |
MRI y tractografía probabilística |
Área tegmental ventral y sustancia negra |
Potencian selectivamente la memoria episódica de información importante mediante circuitos dopaminérgicos con el hipocampo, actuando como filtro motivacional de lo que vale la pena recordar. |
Memoria |
Poh et al. (2022) |
Experimental |
Humanos |
fMRI |
Área tegmental ventral |
Libera dopamina cuando el individuo está curioso, lo que prepara al hipocampo para formar memorias más sólidas y duraderas. |
Memoria |
Glykos & Fujisawa (2024) |
Experimental |
Ratones |
Optogenética, registros electrofisiológicos y tareas de control |
Área tegmental ventral |
Mantiene activamente información en la memoria a corto plazo durante la toma de decisiones. |
Memoria |
Pak et al. (2019) |
Experimental |
Humanos |
SPET |
Núcleos de rafe |
Mediante la serotonina de los núcleos de rafe, facilita la recuperación eficiente de información. |
Memoria |
Blest-Hopley et al. (2023) |
Experimental |
Humanos |
fMRI |
Mesencefalo bilateral |
Se activa de forma creciente mientras aprendemos nueva información verbal, actuando como facilitador del proceso de aprendizaje repetido y su consolidación. |
Funcione Ejecutivas |
Bègue et al. (2022) |
Experimental |
Humanos |
fMRI |
Área tegmental ventral y sustancia negra |
Son esenciales para asignar flexiblemente recursos cognitivos según la demanda de la tarea. |
Funciones Ejecutivas |
Kragel et al. (2019) |
Experimental |
Humanos |
fMRI |
Sustancia gris periacueductal |
Permite que cuando la demanda de memoria de trabajo es alta se movilicen recursos fisiológicos y energéticos para sostener el rendimiento. |
Fuente: Elaboración propia. Abreviaciones: (MRI = Resonancia Magnética); (fMRI = Resonancia Magnética Funcional); (SPET = Tomografía Computarizada por Emisión de Fotón Único).
Atención
Campagner et al.21, en un estudio en ratones C57BL/6J machos adultos y mediante registros electrofisiológicos de unidades individuales con sondas Neuropixels, combinado con la inactivación quimiogenética (hM4Di) de proyecciones específicas, señalan que el encéfalo posee un circuito dedicado que transforma la memoria espacial en acciones motoras inmediatas.
En este contexto,el colículo superior del mesencéfalo desempeña un rol fundamental como generador de comandos motores de orientación, además de tener funciones atencionales hacia estímulos sensoriales. Los autores señalan que el colículo superior también recibe instrucciones de la corteza para orientarse hacia objetivos memorizados. Del mismo modo, integra información de la corteza retrosplenial para crear un mapa de dirección del refugio, permitiendo que el ratón gire su cuerpo y cabeza hacia el lugar seguro en milisegundos tras detectar una amenaza. Estos resultados aportan evidencia sobre la conexión entre las funciones encefálicas superiores y la actividad del colículo superior del mesencéfalo.
Los autores concluyen que la precisión de esta respuesta depende de la comunicación directa entre ambos; si se inactiva la conexión entre las funciones encefálicas complejas y el colículo superior, los animales pueden iniciar la huida, pero lo hacen en la dirección incorrecta, ya que el sistema motor pierde el acceso a la información espacial crítica almacenada en la memoria.
Percepción
Quass et al.22 investigan si el colículo inferior, núcleo auditivo del mesencéfalo, integra información sensorial con variables cognitivas dependientes de la tarea. Mediante imágenes de calcio de dos fotones en ratones que realizaban una tarea auditiva Go/No-Go. Los autores observaron que las neuronas del shell del colículo inferior no codifican únicamente las propiedades físicas del sonido, sino también la acción del animal y el resultado del ensayo. A nivel poblacional, la actividad neuronal permite decodificar no solo qué sonido se presentó, sino si el animal responderá y si tendrá éxito, incluso antes de que ejecute la acción.
Estos hallazgos redefinen el rol del mesencéfalo auditivo como un nodo de procesamiento de orden superior. El colículo inferior muestra representaciones mixtas y dinámicas que integran estímulo, intención y consecuencia, generando estados neuronales que divergen según la decisión conductual. Dado que estas señales se proyectan a núcleos talámicos de alto orden, el estudio sugiere que la valencia aprendida y la guía de decisiones sensoriales no dependen exclusivamente de la corteza, sino que emergen parcialmente en el mesencéfalo. En conjunto, el colículo inferior actúa como un puente entre sensación y acción, alineando la información auditiva con los objetivos y resultados relevantes para la conducta.
Por otro lado, Molas et al.23 estudiaron cómo el encéfalo aprende que una aparente amenaza en realidad es segura, centrando el análisis en circuitos del mesencéfalo. En ratones, los autores estudiaron la adaptación de conductas defensivas innatas ante la exposición repetida a un estímulo visual inminente que no conllevaba daño real. Para ello combinaron un paradigma de amenaza visual tipo looming con fotometría de fibra, optogenética, ablación genética selectiva y rastreo viral retrógrado, lo que permitió registrar y manipular con precisión la actividad de subpoblaciones neuronales del núcleo interpeduncular y mapear sus proyecciones hacia el núcleo tegmental laterodorsal.
Los resultados posicionan al mesencéfalo, y en particular al núcleo interpeduncular, como un nodo clave en la cognición defensiva y la evaluación de seguridad. La disminución progresiva de la actividad del núcleo interpeduncular acompaña el aprendizaje de que la amenaza es inofensiva, permitiendo el paso de conductas de evitación rígida a exploración adaptativa. Las neuronas de este núcleo codifican señales de seguridad asociadas al refugio, mientras que el circuito de proyección hacia el tegmental laterodorsal actúa como un mecanismo de gating que habilita el aprendizaje defensivo flexible. En conjunto, el estudio muestra que el mesencéfalo no solo ejecuta respuestas motoras de miedo, sino que participa activamente en la actualización cognitiva del riesgo, un proceso fundamental cuya disfunción podría contribuir a trastornos de ansiedad.
Memoria
Elliott et al.24 realizaron un estudio experimental en humanos para examinar si las diferencias individuales en la estructura de los circuitos mesencefálicos, específicamente aquellos que involucran la sustancia negra y el área tegmental ventral, explican la codificación de la memoria motivada en una muestra de 46 adultos jóvenes. Los participantes completaron una tarea de memoria de fuente motivada con condiciones de recompensa, castigo y control, mientras que, mediante MRI ponderada por difusión y tractografía probabilística, se estimó la densidad de los tractos que conectan el mesencéfalo con el hipocampo y el estriado. Análisis estadísticos correlacionales y de regresión permitieron vincular estas medidas estructurales con el desempeño cognitivo.
Los resultados muestran que el mesencéfalo cumple un rol central y específico en la cognición, particularmente en la priorización de la memoria episódica bajo condiciones motivacionales. La densidad de las conexiones mesencéfalo–hipocampo predijo selectivamente la mejora en la memoria de fuente, indicando que el bucle entres estas áreas facilita la plasticidad sináptica necesaria para consolidar recuerdos relevantes. En contraste, las vías mesostriatales no se asociaron con el rendimiento en esta tarea, lo que sugiere una disociación funcional entre los circuitos dopaminérgicos implicados en aprendizaje por refuerzo y aquellos que sostienen la memoria episódica motivada, reforzando la idea de un mesencéfalo heterogéneo y topológicamente organizado con funciones cognitivas diferenciadas.
Del mismo modo, Poh et al.25 realizaron un estudio experimental con resonancia magnética funcional (fMRI) para identificar un mecanismo específico mediante el cual la motivación cognitiva, en particular la curiosidad, facilita la formación de la memoria. Utilizando un paradigma de trivia, los autores analizaron la actividad cerebral durante una fase de anticipación y una fase de codificación, aplicando análisis multivariados de patrones para caracterizar un “estado de convergencia” hipocampal, definido como la adopción de patrones de activación más estables y típicos. Mediante modelos de efectos mixtos y análisis de mediación, vincularon la activación mesencefálica, la convergencia hipocampal y el éxito del recuerdo posterior.
Los resultados muestran que la curiosidad incrementa la activación del área tegmental ventral del mesencéfalo durante la anticipación, y que esta activación predice el aprendizaje exitoso al modular el estado funcional del hipocampo. Específicamente, la actividad del área tegmental ventral sesga al hipocampo hacia un estado de convergencia óptimo para la codificación, mediando la relación entre motivación y memoria. Los autores proponen una cascada jerárquica en la que un estado cognitivo motivacional recluta al sistema dopaminérgico mesencefálico, el cual a su vez prepara al hipocampo para la plasticidad sináptica necesaria para la consolidación de nueva información, reforzando el papel del mesencéfalo como puente entre cognición y memoria.
Blest-Hopley et al.26 llevaron a cabo un estudio comparativo, de resonancia magnética funcional (fMRI), para examinar las bases neuronales del deterioro del aprendizaje verbal en consumidores regulares de cannabis. La muestra incluyó 21 usuarios con inicio de consumo en la adolescencia y 21 controles no consumidores, quienes realizaron una tarea de aprendizaje verbal de pares asociados durante el escaneo, lo que permitió analizar la activación cerebral de forma progresiva a lo largo de los ensayos.
Los resultados mostraron que, en participantes sanos, el aprendizaje se asocia con un aumento gradual y progresivo de activación del mesencéfalo, junto con el giro parahipocampal y el tálamo. En contraste, los usuarios de cannabis presentaron un aprendizaje más lento y un patrón de activación alterado en el mesencéfalo. Los autores concluyen que la disfunción mesencefálica, en interacción con regiones temporales mediales, subyace al deterioro del aprendizaje verbal observado en jóvenes consumidores de cannabis.
El estudio muestra que, en condiciones normales, el aprendizaje eficaz se asocia con una amplia activación mesencefálica, lo que sugiere que esta estructura es clave para sostener el progreso del aprendizaje a través de ensayos repetidos. Esta participación mesencefálica parece facilitar la integración entre la saliencia del estímulo, la motivación y la codificación mnésica, en coordinación con regiones del lóbulo temporal medial y el tálamo; siendo indispensable para la adquisición de nueva información y para la optimización del aprendizaje dependiente de la experiencia.
Por otro lado, Glykos & Fujisawa27 investigan si el mesencéfalo, específicamente el área tegmental ventral, participa directamente en funciones cognitivas superiores como la memoria a corto plazo, más allá de su papel clásico en recompensa y motivación. Utilizando ratones en una tarea de laberinto en T con un período de retraso, el estudio combinó optogenética, registros electrofisiológicos de alta densidad y tareas de control para aislar la memoria de factores motores o motivacionales. Este diseño permitió demostrar que la actividad neuronal del área tegmental ventral no solo acompaña la expectativa de recompensa, sino que varía sistemáticamente según la decisión basada en la memoria (izquierda vs. derecha) que el animal debe mantener internamente durante el retraso.
Los resultados muestran que subpoblaciones específicas de neuronas dopaminérgicas y, de forma aún más marcada, GABAérgicas, codifican representaciones internas de la trayectoria futura durante el período de memoria, incluso cuando el entorno físico es idéntico. Esta actividad no se explica por velocidad, preparación motora ni historia de recompensas, y adopta un patrón secuencial poblacional, similar al observado en corteza prefrontal. En conjunto, los hallazgos indican que el área tegmental ventral forma parte activa de los circuitos de mantenimiento y manipulación de memoria, interactuando dinámicamente con la corteza para guiar decisiones dirigidas a metas. Así, el mesencéfalo emerge como un nodo cognitivo que organiza información interna relevante para la toma de decisiones complejas, y no solo como un sistema reactivo a la recompensa.
Pak et al.28, por su parte, analizan si la disponibilidad del transportador de serotonina en el mesencéfalo se asocia al rendimiento mnésico en adultos sanos. Utilizando Tomografía Computarizada por Emisión de Fotón Único (SPET) con ^123I-FP-CIT en 181 sujetos sin patología neurológica, los autores cuantifican la unión del SERT en regiones del tronco encefálico y la relacionan con el desempeño en el HVLT-R (prueba de aprendizaje y memoria verbal). Los resultados muestran que una mayor disponibilidad de transportador de serotonina en el mesencéfalo se correlaciona positivamente con el recuerdo total y el recuerdo diferido, sugiriendo que incluso en condiciones no patológicas la integridad del sistema serotoninérgico está vinculada a la eficacia de la memoria verbal.
Desde una perspectiva cognitiva, el estudio posiciona al mesencéfalo (a través de los núcleos del rafe) como un modulador neuroquímico clave de los procesos de recuperación de la memoria. La serotonina no codifica contenidos, pero ajusta el estado funcional de las redes corticales y límbicas implicadas en el recuerdo. La asociación más robusta observada en mujeres sugiere además una interacción entre el sistema serotoninérgico y factores hormonales, reforzando la idea de que el mesencéfalo contribuye a la cognición no sólo mediante circuitos dopaminérgicos y atencionales, sino también regulando el estado neurobiológico que hace posible un acceso eficiente a la información almacenada.
Funciones ejecutivas
Bègue et al.29 realizaron un estudio experimental de neuroimagen funcional con el objetivo de examinar si los centros de integración entre recompensa y cognición, dentro de la red cortico–ganglios basales–cerebelo, participan en la fisiopatología de la apatía a lo largo del espectro de la psicosis. Partiendo de la hipótesis de que la apatía refleja un déficit en la capacidad de estas redes para integrar motivación y demanda cognitiva, los autores evaluaron a 50 participantes del continuo de la psicosis (individuos con alta esquizotipia y pacientes con primer episodio psicótico) y a 27 controles sanos. Durante una tarea n-back con distintos niveles de carga cognitiva y recompensa monetaria, se utilizó fMRI para identificar regiones cuya activación convergía ante el esfuerzo cognitivo y el incentivo, así como para relacionar esta actividad con la severidad de la apatía.
Los resultados señalan un rol central del mesencéfalo en la cognición dependiente del esfuerzo, particularmente en la movilización y asignación flexible de recursos cognitivos. Una mayor apatía se asoció con hipoactividad mesencefálica durante condiciones de alta carga cognitiva, junto con alteraciones en circuitos cortico-estriatales y cerebelosos. Los autores interpretan que el soporte dopaminérgico mesencefálico es crucial para transformar los incentivos en rendimiento cognitivo efectivo, especialmente en tareas que demandan memoria de trabajo. En conjunto, los hallazgos respaldan la idea de que la disfunción de la red cortico–estriatal–mesencefálica constituye un sustrato biológico clave de la apatía, posicionando al mesencéfalo como un componente esencial en la integración entre motivación y cognición.
En cambio, Kragel et al.30 tuvieron como objetivo determinar si la sustancia gris periacueductal (SGP) participa activamente en la cognición, específicamente bajo demandas elevadas de memoria de trabajo, superando limitaciones de resolución espacial de estudios previos. Para ello utilizaron fMRI de ultra-alto campo (7T) en 24 participantes mientras realizaban una tarea n-back con baja (1-back) y alta carga cognitiva (3-back). Implementaron procedimientos avanzados de segmentación individual de la PAG, análisis multivariado con máquinas de vectores de soporte y registros fisiológicos periféricos, permitiendo comparar la actividad de la SGP con otros núcleos mesencefálicos como la sustancia negra y el área tegmental ventral.
Los resultados muestran que el mesencéfalo, y en particular la SGP, cumple un rol directo en el control cognitivo y la regulación del esfuerzo. La SGP discriminó con alta precisión entre distintos niveles de carga cognitiva, con activación selectiva en las columnas lateral y ventrolateral durante tareas más exigentes. Esta actividad se asoció a cambios autonómicos y a un ajuste del rendimiento conductual, lo que sugiere que la SGP contribuye a la alostasis, coordinando recursos energéticos cuando la demanda cognitiva aumenta. En conjunto, el estudio demuestra que la cognición de alto esfuerzo no es exclusivamente cortical, sino que depende de una red distribuida que incluye núcleos mesencefálicos encargados de sostener el rendimiento bajo presión cognitiva.
Discusión
En conjunto, la evidencia revisada desafía de manera consistente la concepción clásica del mesencéfalo como una estructura moduladora de bajo nivel. Por el contrario, los estudios analizados convergen en posicionarlo como un eje integrador activo de funciones encefálicas complejas, operando de manera directa con redes cortico-límbicas y condicionando su rendimiento.
Estos hallazgos obligan a replantear modelos jerárquicos clásicos del encéfalo y sugieren que muchas funciones encefálicas complejas no “descienden” desde la corteza hacia estructuras subcorticales, sino que emergen de circuitos distribuidos donde el mesencéfalo juega un rol causal y no accesorio. Esto tiene implicaciones directas para la comprensión de las alteraciones neurológicas, neuropsicológicas y neuropsiquiátricas, en las cuales la disfunción mesencefálica podría constituir un mecanismo central más que periférico.
En este marco, resulta particularmente relevante la convergencia entre estos hallazgos empíricos y propuestas teóricas que cuestionan la identificación exclusiva de la conciencia con la actividad cortical. Entre ellas, la propuesta desarrollada por Merker en La cascada de eferencia, la conciencia y su sí mismo31.
Para Merker, el colículo superior posee un rol fundamental en la organización de la experiencia consciente. Lo describe como un supercentro de orientación, encargado de decidir, hacia dónde se dirige la atención y la acción del organismo. El colículo superior recibe información sensorial directa proveniente de los sentidos y señales descendentes desde la corteza cerebral relacionadas con metas, expectativas y contexto. Al integrar ambas fuentes, el colículo superior procesa la multitud de estímulos y determina cuál de ellos tendrá prioridad inmediata.
Partiendo de esto, Merker sostiene que la conciencia tiene una organización egocéntrica, es decir, todo lo que el organismo percibe está estructurado desde un punto interno de referencia, un “aquí” desde el cual el mundo se presenta. Este punto no corresponde a una imagen mental del cuerpo ni a una representación explícita del “yo”, sino a un pivote funcional desde el cual se orientan la mirada, la cabeza y la atención. Basándose en la geometría de los movimientos de orientación y en la organización de los circuitos sensoriomotores, Merker propone que la base anatómica de este egocentro está en el colículo superior; en este sentido, el colículo superior organiza la interacción del organismo con su entorno permitiendo que funcione como unidad coherente, capaz de orientarse, seleccionar objetivo y adaptarse de forma integrada.
Complementariamente, Merker señala que el colículo superior define el punto de referencia desde el cual se orienta la experiencia, pero, el núcleo pulvinar del tálamo es el lugar donde se organiza el contenido consciente e integra la información procesada por la corteza para generar una representación general y coherente del entorno. Esto se fundamenta en varias características, en primer lugar, el núcleo pulvinar posee circuitos inhibitorios que permiten filtrar la información cortical, seleccionando la interpretación más consistente del estado actual del mundo. En segundo lugar, mantiene conexiones recíprocas amplias con áreas parietales, temporales, prefrontales e insulares, así como con los colículos, lo que lo posiciona estratégicamente para integrar percepción, atención y acción. En tercer lugar, la actividad del pulvinar se relaciona más estrechamente con la percepción consciente de los estímulos que la actividad de áreas sensoriales primarias, y su inactivación obstruye la selección de planes de acción.
Partiendo de esto, los colículos superiores son el punto de referencia interno desde el cual se dirige la atención y la acción, mientras que el núcleo pulvinar organiza el mundo perceptivo que se presenta a la conciencia. Así, los colículos superiores pueden entenderse como agentes que dirigen la experiencia, y el pulvinar como el centro donde se exhibe el modelo de la realidad construido por la corteza.
Del mismo modo, estos sistemas subcorticales proporcionan la conciencia primaria y control básico de acción, siendo la corteza cerebral un sistema que amplifica el almacenamiento y procesamiento de la información compleja, con la finalidad de darle sofisticación y riqueza a los contenidos de la conciencia31. Incluso con la pérdida de la corteza cerebral las funciones subcorticales permiten la adaptación a las necesidades del entorno y generar un comportamiento coherente orientado a metas, motivado y con guía sensorial32, 33.
Desde este marco conceptual, los procesos atencionales dejan de explicarse únicamente como mecanismos mediados por redes corticales frontoparietales y pasan a concebirse como un proceso de selección, orientación y priorización sustentado por circuitos subcorticales que organizan el acceso a la experiencia consciente, procesando la información cortical de manera integrada21.
Esta reorganización del papel de la atención conduce de manera natural a una reconsideración de los procesos perceptivos. En lugar de ser un procesamiento ascendente estrictamente cortical, la percepción puede entenderse como una experiencia integrada que requiere la convergencia de múltiples modalidades sensoriales dentro de un espacio funcional unificado, sostenido por sistemas subcorticales integradores. Desde este marco, la coherencia perceptiva no emerge únicamente de la corteza asociativa, sino de mecanismos que preceden la diferenciación cortical y que permiten la experiencia perceptiva como un todo continuo y significativo22, 23.
A partir de esta integración perceptiva, la memoria adquiere una dimensión distinta, particularmente en lo que respecta a la continuidad del contenido consciente. Más allá de los circuitos clásicos hipocampo-corticales, los resultados sugieren que la memoria de trabajo y contextual se apoya en sistemas subcorticales capaces de mantener la persistencia experiencial, facilitando la vinculación temporal entre estímulos, estados internos y respuestas. En este sentido, la memoria no solo almacena información, sino que contribuye a la estabilidad del marco consciente dentro del cual evocan las funciones encefálicas complejas24-28.
Finalmente, esta visión integradora se extiende a las funciones ejecutivas, tradicionalmente atribuidas de forma casi exclusiva a la corteza prefrontal. Desde el enfoque propuesto por Merker, estas funciones pueden interpretarse como expresiones corticales de sistemas reguladores más profundos, responsables de la coherencia global del comportamiento y del estado consciente. Así, la planificación, la inhibición y la toma de decisiones no emergen de manera aislada en la corteza, sino que reflejan la interacción entre mecanismos subcorticales de control y su modulación cortical, cerrando el ciclo funcional que articula atención, percepción, memoria y acción dirigida29-33.
En este sentido, los hallazgos revisados no solo son compatibles con el modelo de Merker, sino que aportan evidencia empírica que refuerza la plausibilidad funcional de un eje subcortical integrador del funcionamiento cerebral. En este marco, el mesencéfalo no actúa como un simple modulador inespecífico, sino como una estructura que posibilita la coherencia atencional, perceptiva, mnésica y ejecutiva. Dicho esto, las funciones encefálicas complejas y la conciencia, se comprenden mejor no como productos exclusivos de la corteza, sino como propiedades emergentes de circuitos distribuidos jerárquicamente no lineales, donde las estructuras subcorticales podrían desempeñar un rol causal determinante.
No obstante, es importante considerar algunas limitaciones de la evidencia revisada. Muchos de los estudios analizados presentan tamaños de muestra reducidos o se basan en modelos animales, lo que puede limitar la generalización directa de los hallazgos al funcionamiento cerebral humano.
Asimismo, la heterogeneidad metodológica entre investigaciones dificulta establecer conclusiones completamente unificadas sobre los mecanismos específicos mediante los cuales el mesencéfalo participa en las funciones encefálicas complejas. Desde una perspectiva traslacional, estos hallazgos abren líneas de investigación relevantes para la neurociencia particularmente en relación con trastornos caracterizados por alteraciones de la atención, percepción, memoria y funciones ejecutivas.
En este sentido, una comprensión más precisa de los circuitos mesencefálicos podría contribuir al desarrollo de nuevos enfoques diagnósticos y terapéuticos dirigidos a redes subcorticales, ampliando las estrategias actuales centradas predominantemente en la corteza cerebral.
Conclusión
En conjunto, esta revisión narrativa permite concluir que el mesencéfalo constituye un eje integrador fundamental para la organización de las funciones encefálicas complejas, al integrar de manera directa procesos de orientación, selección, integración sensorial y control de la acción con redes corticales amplias. Lejos de operar como un simple sistema modulador, el mesencéfalo participa activamente en la atención, la percepción, la memoria y las funciones ejecutivas. Desde esta perspectiva, su rol resulta indispensable para comprender cómo el encéfalo genera un funcionamiento integrado y adaptativo, en el que las funciones encefálicas complejas emergen de la interacción dinámica entre sistemas subcorticales y corticales, más que de la actividad aislada de niveles superiores.
Limitaciones
Dado el carácter narrativo de la revisión y la heterogeneidad de los estudios experimentales incluidos, las conclusiones deben entenderse como un marco integrador plausible, pero no como generalizaciones definitivas.
Descargo de responsabilidad
Las conclusiones de este artículo son únicamente responsabilidad de los autores y no reflejan necesariamente las opiniones, políticas o posiciones de Ciencia y Salud, sus editores, o del Instituto Tecnológico de Santo Domingo (INTEC).
Financiamiento
Este estudio no recibió financiamiento de ninguna fuente pública, privada ni comercial.
Conflicto de intereses
Los autores declaran que la presente revisión narrativa se realizó en ausencia de relaciones comerciales o financieras que pudieran interpretarse como un potencial conflicto de intereses.
Agradecimientos
Los autores agradecen al Instituto de Neurociencias Aplicadas y al Grupo de Investigación Médica BIOSEARCH, ambos pertenecientes a la Universidad Iberoamericana (UNIBE), por el apoyo académico, el acompañamiento institucional y el intercambio científico que contribuyeron al desarrollo de este trabajo.
Contribución de los autores
Eduardo Reynoso-Arellano contribuyó a la conceptualización del estudio, al diseño metodológico y a la redacción de la introducción, metodología, discusión y conclusiones. Jonathan Jiménez-Carvajal participó en la redacción de la introducción y el resumen, y en la adaptación del manuscrito a las normas de la revista. Hugo Marte-Santana realizó la revisión crítica del manuscrito, la supervisión académica y la validación final del contenido. Todos los autores aprobaron la versión final del artículo.
Declaración ética
Este estudio corresponde a una revisión narrativa de la literatura, por lo que no implicó la participación directa de seres humanos o animales ni el uso de datos personales identificables; en consecuencia, no fue requerida la aprobación por un comité de ética en investigación.
Referencias
1. Rakic P. Evolution of the neocortex: a perspective from developmental biology. Nat Rev Neurosci [Internet]. 2009;10(10):724-35. Disponible en: https://doi.org/10.1038/nrn2719
2. Bertolero MA, Yeo BTT, D’Esposito M. The modular and integrative functional architecture of the human brain. Proc Natl Acad Sci U S A [Internet]. 2015;112(49):E6798-807. Disponible en: https://doi.org/10.1073/pnas.1510619112
3. Bunge M. Reconceptualizing mental disorders: from symptoms to organs. PsyCh J. 2017;6(2):161-5. doi:10.1002/pchj.171
4. Bruner E, De la Cuétara JM, Masters M, Amano H, Ogihara N. Functional craniology and brain evolution: from paleontology to biomedicine. Front Neuroanat [Internet]. 2014;8:19. Disponible en: https://doi.org/10.3389/fnana.2014.00019
5. Hawkins J, Lewis M, Klukas M, Purdy S, Ahmad S. A framework for intelligence and cortical function based on grid cells in the neocortex. Front Neural Circuits [Internet]. 2019;12:121. Disponible en: https://doi.org/10.3389/fncir.2018.00121
6. Rajangam S, Tseng PH, Yin A, Lehew G, Schwarz D, Lebedev MA, et al. Wireless cortical brain-machine interface for whole-body navigation in primates. Sci Rep [Internet]. 2016;6(1):22170. Disponible en: https://www.nature.com/articles/srep22170
7. Shuker DM, Kvarnemo C. The definition of sexual selection. Behav Ecol [Internet]. 2021;32(5):781-94. Disponible en: https://pmc.ncbi.nlm.nih.gov/articles/PMC8528540/
8. Ågren JA, Clark AG. Selfish genetic elements. PLoS Genet [Internet]. 2018;14(11):e1007700. Disponible en: https://pmc.ncbi.nlm.nih.gov/articles/PMC6237296/
9. DeFelipe J. The evolution of the brain, the human nature of cortical circuits, and intellectual creativity. Front Neuroanat [Internet]. 2011;5:29. Disponible en: https://doi.org/10.3389/fnana.2011.00029
10. Herculano-Houzel S. The remarkable, yet not extraordinary, human brain as a scaled-up primate brain and its associated cost. Proc Natl Acad Sci U S A [Internet]. 2012;109(Suppl 1):10661-8. Disponible en: https://doi.org/10.1073/pnas.1201895109
11. Beeler JA, Dreyer JK. Synchronicity: the role of midbrain dopamine in whole-brain coordination. eNeuro [Internet]. 2019;6(2):ENEURO.0345-18.2019. Disponible en: https://doi.org/10.1523/ENEURO.0345-18.2019
12. Markram H, Muller E, Ramaswamy S, Reimann MW, Abdellah M, Sanchez CA, et al. Reconstruction and simulation of neocortical microcircuitry. Cell. 2015;163(2):456-92. doi:10.1016/j.cell.2015.09.029
13. Rosales-Reynoso MA, Juárez-Vázquez CI, Barros-Núñez P. Evolución y genómica del cerebro humano. Neurologia [Internet]. 2015;33(4):254-65. Disponible en: https://doi.org/10.1016/j.nrl.2015.06.002
14. Caminero F, Cascella M. Neuroanatomy, mesencephalon midbrain [Internet]. StatPearls - NCBI Bookshelf. 2024. Disponible en: https://www.ncbi.nlm.nih.gov/books/NBK551509/
15. Basso MA, May PJ. Circuits for action and cognition: a view from the superior colliculus. Annu Rev Vis Sci [Internet]. 2017;3(1):197-226. Disponible en: https://doi.org/10.1146/annurev-vision-102016-061234
16. Cardozo Pinto DF, Lammel S. Viral vector strategies for investigating midbrain dopamine circuits underlying motivated behaviors. Pharmacol Biochem Behav [Internet]. 2017;174:23-32. Disponible en: https://doi.org/10.1016/j.pbb.2017.02.006
17. Bisley JW, Mirpour K. The neural instantiation of a priority map. Curr Opin Psychol [Internet]. 2019;29:108-12. Disponible en: https://doi.org/10.1016/j.copsyc.2019.01.002
18. Vitale F, Capozzo A, Mazzone P, Scarnati E. Neurophysiology of the pedunculopontine tegmental nucleus. Neurobiol Dis [Internet]. 2018;128:19-30. Disponible en: https://doi.org/10.1016/j.nbd.2018.03.004
19. Tapper AR, Molas S. Midbrain circuits of novelty processing. Neurobiol Learn Mem [Internet]. 2020;176:107323. Disponible en: https://doi.org/10.1016/j.nlm.2020.107323
20. Esposito M, Palermo S, Nahi YC, Tamietto M, Celeghin A. Implicit selective attention: the role of the mesencephalic-basal ganglia system. Curr Neuropharmacol [Internet]. 2023;22(9):1497-512. Disponible en: https://doi.org/10.2174/1570159X21666230831163052
21. Campagner D, Vale R, Tan YL, Iordanidou P, Arocas OP, Claudi F, et al. A cortico-collicular circuit for orienting to shelter during escape. Nature [Internet]. 2022;613(7942):111-9. Disponible en: https://doi.org/10.1038/s41586-022-05553-9
22. Quass G, Rogalla M, Ford A, Apostolides P. Mixed representations of sound and action in the auditory midbrain. bioRxiv [Internet]. 2023. Disponible en: https://doi.org/10.1101/2023.09.19.558449
23. Molas S, Williams E, Snively L, O’Meara B, Jacobs H, Kolb M, et al. Interpeduncular GABAergic neuron function controls threat processing and innate defensive adaptive learning. Research Square [Internet]. 2024. Disponible en: https://doi.org/10.21203/rs.3.rs-4661779/v1
24. Elliott BL, D’Ardenne K, Murty VP, Brewer GA, McClure SM. Midbrain-hippocampus structural connectivity selectively predicts motivated memory encoding. J Neurosci [Internet]. 2022;42(50):9426-34. Disponible en: https://doi.org/10.1523/JNEUROSCI.0945-22.2022
25. Poh JH, Vu MAT, Stanek JK, Hsiung A, Egner T, Adcock RA. Hippocampal convergence during anticipatory midbrain activation promotes subsequent memory formation. Nat Commun [Internet]. 2022;13(1):6729. Disponible en: https://doi.org/10.1038/s41467-022-34459-3
26. Blest-Hopley G, O’Neill A, Wilson R, Giampietro V, Bhattacharyya S. Disrupted parahippocampal and midbrain function underlie slower verbal learning in adolescent-onset regular cannabis use. Psychopharmacology (Berl) [Internet]. 2019;238(5):1315-31. Disponible en: https://doi.org/10.1007/s00213-019-05407-9
27. Glykos V, Fujisawa S. Memory-specific encoding activities of the ventral tegmental area dopamine and GABA neurons. Elife [Internet]. 2024;12. Disponible en: https://doi.org/10.7554/eLife.89743.3
28. Pak K, Shin S, Kim K, Seok JW, Kim IJ. Memory performance associates with serotonin transporter in midbrain and pons in healthy subjects. PubMed [Internet]. 2019. Disponible en: https://doi.org/10.1967/s002449911055
29. Bègue I, Brakowski J, Seifritz E, Dagher A, Tobler PN, Kirschner M, et al. Cerebellar and cortico-striatal-midbrain contributions to reward-cognition processes and apathy within the psychosis continuum. Schizophr Res [Internet]. 2022;246:85-94. Disponible en: https://doi.org/10.1016/j.schres.2022.06.010
30. Kragel PA, Bianciardi M, Hartley L, Matthewson G, Choi JK, Quigley KS, et al. Functional involvement of human periaqueductal gray and other midbrain nuclei in cognitive control. J Neurosci [Internet]. 2019;39(31):6180-9. Disponible en: https://doi.org/10.1523/JNEUROSCI.2043-18.2019
31. Merker B. The efference cascade, consciousness, and its self: naturalizing the first person pivot of action control. Front Psychol [Internet]. 2013;4:501. Disponible en: https://doi.org/10.3389/fpsyg.2013.00501
32. Merker B, Williford K, Rudrauf D. The integrated information theory of consciousness: a case of mistaken identity. Behav Brain Sci [Internet]. 2021;45:e41. Disponible en: https://doi.org/10.1017/S0140525X21000881
33. Merker B. Consciousness without a cerebral cortex: a challenge for neuroscience and medicine. Behav Brain Sci [Internet]. 2007;30(1):63-81. Disponible en: https://doi.org/10.1017/S0140525X07000891
_______________________________
1 Instituto de Neurociencias Aplicadas, Universidad Iberoamericana (UNIBE). Santo Domingo, República Dominicana. ORCID: https://orcid.org/0000-0002-6001-6990, email: eduardoreynosoarellano@gmail.com
2 Grupo de Investigación Médica BIOSEARCH, Universidad Iberoamericana (UNIBE). Santo Domingo, República Dominicana. ORCID: https://orcid.org/0009-0009-6320-1006, email: jjimenez22@est.unibe.edu.do
3 Instituto de Neurociencias Aplicadas, Universidad Iberoamericana (UNIBE). Santo Domingo, Dominican Republic. ORCID: https://orcid.org/0000-0003-0971-0423, email: h.marte@unibe.edu.do